 HUN-REN Szegedi Biológiai Kutatóközpont

A biomembránok az élővilág legalapvetőbb és legelterjedtebb barrierjei. „Intelligens” rendszerek, hiszen lipid kettősrétegük szerkezeti alapként szolgál, míg a membránhoz kötődő fehérjék szabályozzák az anyag- és információátvitelt ezen a barrieren keresztül – ami jól kontrollált biológiai folyamatok formájában nyilvánul meg. Kutatásaink középpontjában ionokat szállító membránfehérjék, sejthártyák és sejtszervecskék membránjai, valamint olyan vízben oldódó fehérjék állnak, amelyek membránokkal vagy biomimetikus felületekkel lépnek kölcsönhatásba – mindez szoros összefüggésben az emberi egészséggel és a környezettel. Megközelítésünk alapja a molekuláris biofizika: fizikai módszereket alkalmazunk biológiai problémák vizsgálatára, egészen molekuláris vagy akár atomi részletességig. Kiemelt figyelmet fordítunk kísérleti és elméleti technikáink folyamatos fejlesztésére, és ennek köszönhetően a legkorszerűbb spektroszkópiai és mikroszkópiai módszerek széles tárházával rendelkezünk. Három laboratóriumunk kutatási infrastruktúrája – amely magában foglalja a multimodális spektroszkópiát, a femtoszekundumos biológiát és az atomerő-mikroszkópiát – olyan egymást kiegészítő technikák szinergiáját alkotja, amely egyedülálló módon teszi lehetővé a biomolekuláris rendszerek vizsgálatát nagy térbeli, időbeli és spektrális felbontással. Kutatásaink során igazolást nyert, hogy az e technikákkal gyűjtött nagy felbontású adatok elegendő információt hordoznak ahhoz, hogy „ujjlenyomatként” szolgáljanak a biológiai minták különböző élettani állapotainak azonosításához. Molekuláris biofizikai módszerünk számos külső projektet is támogat kiterjedt – házon belüli, hazai és nemzetközi – együttműködésünkben, amelyek mind az életminőség javítását célozzák.
Gyorshivatkozások
• A Kutatócsoport részletesebb honlapja.
• A Kutatócsoport teljes publikációs listája az utóbbi évekből.
• Integrált paramágneses rezonancia és optikai többdimenziós bio-spektroszkópia (iPRO-MD -BioSpec) (Kiváló Kutatási Infrastruktúra) és a kutatási eszközök részletes jegyzéke.
• Népszerű tudományos profil a facebook-on és youtube videóink.
• A „Ductin” fehérjékkel és forgó ATPázokkal foglalkozó kutatási témánk a Frontiers-nél a Frontiers-nél.
• A Magyar Tudományos Akadémia címlapsztorija a vakuoláris proton-ATPázról szóló közleményünkről.
Membránok és fehérjék multimodális spektroszkópiájának laboratóriuma
Ebben a laboratóriumban a fő technikák a spin-jelző és spin-csapdázó elektron paramágneses rezonancia (EPR) [Csonka et al., 2015; Kóta et al., 2020; Marsh és Páli, 2004; Páli és Kóta, 2026] (1. ábra), moduláris fluoreszcencia [Böde et al., 2026; Sebők-Nagy et al., 2023a], infravörös (FTIR) [Kóta et al., 2004; Kóta et al., 2020; Marsh és Páli, 2001; Páli és Marsh, 200] és gyors kinetikus abszorpciós [Khoroshyy et al., 2021; Misra et al., 2023] spektroszkópiák, kalorimetria [Dér et al., 2007] és számítási technikák [Bashtovyy et al., 2001, 2003; Koto et al., 2025; Krishnan et al. 2026; Marsh és Páli, 2001].
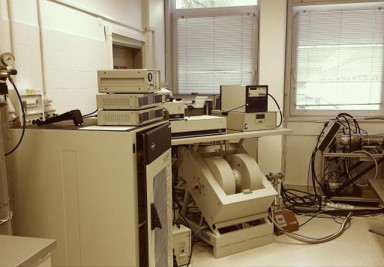
1. ábra. Bruker ELEXSYS E580 típusú, X-sávos, folyamatos hullámú (CW), impulzusos és Fourier-transzformációs (FT) elektron paramágneses rezonancia (EPR) laborunk – Közép- és Kelet-Európa legjobb, legkorszerűbb és legteljesebb felszereltségű X-sávos EPR laboratóriuma.
A fehérje funkció fizikai alapja
A fehérje funkciók hátterében álló fizikai tényezők közé tartoznak a töltések és dipólusok közötti elektrosztatikus kölcsönhatások; az elektronaffinitás és a hozzá kapcsolódó elektrontranszfer-reakciók; a protonaffinitás (pK-érték) és az ahhoz kapcsolódó proton átviteli reakciók, valamint a hidrogénkötések; a fehérje háromdimenziós szerkezetétől függő sztérikus kölcsönhatások; továbbá a fehérjén belüli és körüli vízmolekulákkal, membránfehérjék esetében pedig a környező lipidmolekulákkal való kölcsönhatások. A kromofór prosztetikus csoportokat tartalmazó fehérjék esetében a látható és UV-tartományban végzett spektroszkópiai, illetve kinetikai spektroszkópiai vizsgálatok (2. ábra) alapvető információkkal szolgálnak a fehérje működéséről. Kutatjuk a bakteriális retinális fehérjék – például a bakteriorodopszin protonpumpák vagy a PYP jelátviteli fehérjék – fotociklusát és proton szállításának molekuláris lépéseit, valamint azt, hogy ezek miként függenek a környezeti tényezőktől. Vizsgáljuk azokat a szerkezeti tényezőket, amelyek befolyásolják a citokrómokban zajló elektrontranszfer kinetikáját. Általános kemometriai módszereket fejlesztünk és alkalmazunk spektrális adatmátrixok elemzésére, a jelenségek hátterében álló fizikai folyamatok feltárása érdekében. Emellett vizsgáljuk a „színes” fehérjék integrálási lehetőségeit biofotonikai és bioelektronikai alkalmazásokban. Fő kísérleti berendezésünk egy hangolható Nd:YAG + OPO impulzus lézerből – amely 10 ns-nál rövidebb aktinikus impulzusokat biztosít – és egy, a teljes látható tartományt lefedő, folyamatos fehér mérőfény forrásból áll. A gerjesztett minta időfelbontásos spektrumai 100 ns-nál rövidebb késleltetési időtől kezdődően mérhetők. Ugyanebben a kísérleti elrendezésben nagy időfelbontású, rögzített hullámhosszon végzett kinetikai mérések is kivitelezhetők.


2. ábra. A Gloeobacter-rodopszinon mért, több hullámhosszon, illetve egyetlen hullámhosszon regisztrált abszorpció változási jelek [Misra et al., 2023]. A (b) részben látható szimbólumok az (a) részben bemutatott különbségi spektrumokból, a kiválasztott hullámhosszakon nyert amplitúdókat jelölik.
Organellumok és transzport vezikulák pH-szabályozásában, valamint membránfúziós folyamataiban részt vevő, membránhoz kötött fehérjék
Az eukarióta sejtszervecskék pH-szabályozásának és membránfúziójának molekuláris mechanizmusai számos élettani és kóros folyamat szempontjából kiemelt jelentőséggel bírnak. Kapcsolódó kutatásaink középpontjában e folyamatok három kulcsfontosságú fehérje csoportja áll: a vakuoláris proton-ATPáz (V-ATPáz), valamint a duktin és a szintaxin fehérjék. Az előbbi kettő szoros kapcsolatban áll egymással, mivel a V-ATPáz egy része a duktin családhoz tartozik. Az eukarióta sejtek belső sejtszervecskéinek savasításáért felelős fehérjekomplex a természet leguniverzálisabb protonpumpája, a vakuoláris proton-ATPáz [Abuammar et al., 2021]. A V-ATPáz részt vesz a membránfúziós folyamatokban is, számos betegség kialakulásában játszik meghatározó szerepet, így szövet-specifikus gátlása fontos terápiás célkitűzés. A V-ATPáz egy membránhoz kötött, molekuláris forgó motor. Elsőként mértük meg a V-ATPáz forgási sebességét úgy, hogy az enzim nem esett át genetikai vagy kémiai módosításon, és azt nem is rögzítettünk szilárd hordozó felületre [Ferencz et al., 2013]. Emellett felfedeztük, hogy a V-ATPáz aktivitása oszcilláló transzmembrán elektromos térrel befolyásolható [Ferencz et al., 2017; Petrovszki et al., 2021] (3. ábra). A duktinok és szintaxinok fontos szerepet töltenek be a vezikula-fúziós mechanizmusokban. A duktin család felfedezése óta [Holzenburg et al., 1993] meghatároztuk az egyik réskapcsolati (gap-junction) duktin fehérje membránba történő beépülését, valamint lipidekkel való kölcsönhatását [Kota et al., 2008; Pali et al., 1995; Pali et al., 1999]. Nemrégiben feltártuk a duktin család új szerkezeti sajátosságait, valamint a membránba történő beépülést szabályozó potenciális új tényezőket [Sebők-Nagy et al., 2023b]. Jelenlegi kutatásaink a V-ATPáz és molekuláris környezete közötti kölcsönhatásokra irányulnak; vizsgáljuk többek között azt, hogy a szintetikus gátlószerek és a kétértékű kationok miként befolyásolják az enzim aktivitását, az alegységek összeépülését, valamint a forgó mechanizmust [Páli et al., 2024]. A Genetikai Intézet Drosophila Autofágia kutatócsoportjával együttműködve tanulmányozzuk a szintaxinok membránhoz való kötődését [Laczkó-Dobos et al., 2024], továbbá olyan új tényezőket keresünk, amelyek a V-ATPázon keresztül szabályozzák a lizoszómák savas kémhatásának kialakulását.
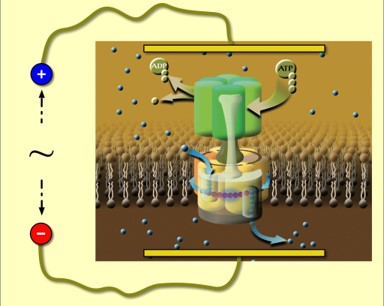
3. ábra. Egy natív V-ATPáz ATP-”fogyasztása” oszcilláló transzmembrán potenciállal módosítható, a hatás pedig attól függ, milyen viszony áll fenn a stimuláció fő frekvencia komponensei és az enzim forgási sebessége között. (Forrás: [Petrovszki et al., 2021].)
Fehérjék feltekeredése, beépülése, szerkezete és összeállása a membránban, valamint a membrán és a víz határfelületén
A biofizika egyik kísérleti és számítási szempontból is nagy kihívást jelentő problémája, hogy a membránfehérjék hogyan épülnek be a lipid kettősrétegbe, hogyan tekerednek fel és rendeződnek el benne – esetenként akár át is hatolva rajta –, gyakran mindenféle segítő molekula (folding asszisztens) közreműködése nélkül, végül felvéve natív, biológiailag funkcionális szerkezetüket. Ebben a folyamatban a fehérje és a membrán lipidjei közötti specifikus kölcsönhatások kulcsfontosságúak, ám ezek részletes feltárása még várat magára. Rekonstituált lizozim-lipid komplexek esetében azt vizsgáljuk, milyen hatással van a lipid kettősréteg erre az antibakteriális enzimre, befolyásolva annak aktivitását, termikus denaturációját, újrakeredését és stabilitását. Mivel még a szoros rokonságban álló, vízoldékony fehérjék is egészen eltérő módon tekerednek ki vagy vissza a membrán-víz határfelületen, ez a jelenség mindenképpen alaposabb megértést igényel. Korábban spektroszkópiai szerkezeti adatok alapján modelleztük számos membránfehérje [Bashtovyy et al., 2003; Pali et al., 2006; Kostrzewa et al., 2000] és polipeptid [Bashtovyy et al., 2001; Kota et al., 2004; Kota et al., 2008] membránba ágyazott szerkezetét. Jelenleg a membránfehérjék szerkezetbiológiájával kapcsolatban a kísérleti és elméleti módszerek – köztük a gépi tanulás – szisztematikusabb ötvözésére összpontosítunk. Megközelítésünk lényege, hogy a vizsgált biomolekuláris komplexekről funkcionális állapotukban és natív környezetükben gyűjtünk szerkezeti adatokat, majd ezeket elméleti módszerekkel kombináljuk, hogy meghatározzuk a fehérjék háromdimenziós térszerkezetét vagy a teljes komplex rendszereket tudjunk felépíteni (4. ábra, [Koto et al., 2026]).
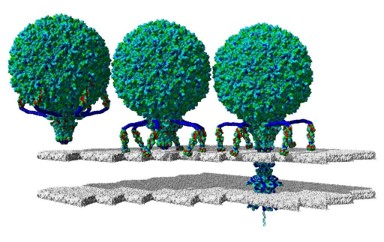
4. ábra. A “gigastructures” adatbázisában szereplő bejegyzésünk [Koto et al., 2026] egy teljes bakteriofág – nevezetesen az E. coli T7 fágjának – első atomi szintű szerkezetét mutatja be. A kép a fág bejutásának fő szakaszait szemlélteti.
Fehérje-határfelületek és szerkezeti átrendeződések természetes és szintetikus membránokban, valamint lipid alapú gyógyszerszállító rendszerekben
A membránfehérjék és lipidek közötti szelektív szerkezeti és dinamikus egyensúly megbomlása vagy megzavarása arra kényszerítheti a szervezetet, hogy – például lipid összetételének módosításával – alkalmazkodjon az új körülményekhez, vagy – amennyiben erre nem képes – elpusztuljon. A fehérje-lipid határfelület számos különböző formát ölthet, amelyek mindegyike biológiai szempontból kulcsfontosságú. A biológiai membránok esetében a fehérje-lipid határfelület lehet poláris – a felszínhez kötődő vagy adszorbeálódott perifériás fehérjék esetén –, illetve apoláris – az integráns transzmembrán fehérjék esetében. A Növénybiológiai Intézettel együttműködésben a fotoszintetikus membránok adaptív átrendeződésében, illetve stresszválaszaiban játszott szerepüket vizsgáljuk a nem kettősrétegű (non-bilayer) lipid fázisoknak és a szabad gyököknek [Kota et al., 2002; Lingvay et al., 2020; Rehman et al., 2021]. Hazai és nemzetközi együttműködések keretében tanulmányozzuk továbbá a membrándinamikát és a lipid-fehérje kölcsönhatásokat a lipid alapú gyógyszer-célba juttató rendszerekben [DeNardis et al., 2026; Klacsová et al., 2026], valamint a szennyvíztisztításban használt, TiO2-alapú szűrőmembránok oldható fehérjékre gyakorolt hatását [Sebők-Nagy et al., 2023a] (5. ábra); emellett jellemzünk olyan, nano-méretű fém-szerves vázszerkezetekből (MOF-okból) álló membránokat is, amelyek a szennyvizek szerves szennyező anyagoktól való megtisztítására szolgálnak [Emam et al., 2024].
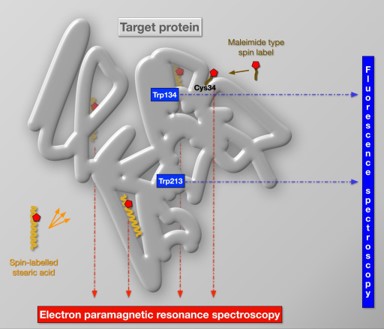
5. ábra. A szarvasmarha-szérumalbumin szerkezetében és dinamikájában bekövetkező változásokról szóló, közelmúltbeli spektroszkópiai közleményünk grafikus összefoglalója; a vizsgálat során a fehérjét TiO2-nanorészecskék hatásának tettük ki, illetve ugyanezen nanorészecskékkel bevont, kereskedelmi forgalomban kapható polivinilidén-fluorid membránokon vezettük át [Sebők-Nagy és mtsai, 2023a].
Femtobiológiai laboratórium
Femtoszekundumos időfelbontású fluoreszcencia-spektroszkópia
Létrehoztunk egy olyan mérőrendszert, amely alkalmas a fluoreszcencia-kinetika vizsgálatára a 100 fs – 10 ns időtartományban, a teljes látható spektrális tartományban [Khakurel et al., 2025]. E berendezés segítségével az FAD és NADH koenzimeket – a biológiai redoxirendszerek meghatározó összetevőit – tanulmányozzuk különböző mikrokörnyezetekben. Megállapítottuk, hogy vizes oldatban az FAD fluoreszcencia-kinetikája (6. ábra) több időállandóval jellemezhető: az egyik, nanoszekundumos (ns) tartományba eső komponens a molekula nyitott konformációjához köthető, míg a pikoszekundumos (ps) tartományba eső egyéb komponensek a zárt konformációknak felelnek meg. A különböző konformációs állapotokban lévő molekulák arányát meghatározó Hofmeister-hatás jól megfigyelhető a kinetikában, ami összhangban van a molekuladinamikai számításokon alapuló modellekkel. A berendezés lehetővé teszi továbbá a ~100 fs élettartamú Stokes-eltolódás, valamint az ahhoz kapcsolódó szolvatációs dinamika vizsgálatát is. Ezzel szemben, a flavocitokróm c szulfid-dehidrogenáz enzimhez kovalensen kötött FAD esetében csupán egyetlen, ps-nál rövidebb időskálájú komponenst figyeltünk meg; ez arra utal, hogy a koenzim rendkívül erős kölcsönhatásban áll a fehérje mikrokörnyezetével. A NADH esetében szintén nyomon követhető a nyitott és zárt konformációk közötti egyensúly, ugyanakkor a Stokes-eltolódás három komponensből áll, ami egy szokatlanul összetett vibrációs relaxációs folyamatra vezethető vissza.
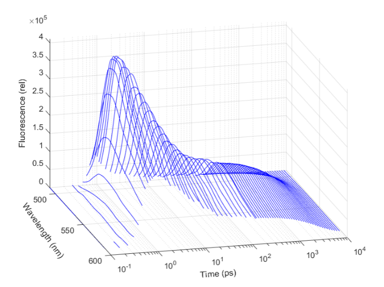
6. ábra. Az FAD fluoreszcencia kinetikája az idő- és hullámhossztartományban.
A gerjesztett állapotban végbemenő, fent említett reakciók – a retinális fehérjék fény indukálta, alapállapotbeli reakcióihoz hasonlóan – elsőrendű kinetikával jellemezhetők. Az ilyen összetett rendszerekben zajló reakciók elemzésének szokásos módja az exponenciális tagokat tartalmazó nemlineáris regresszión alapul; e módszer alkalmazása azonban számos nehézséggel jár. A fő problémát az jelenti, hogy a kísérleti adatokban jelen lévő csekély zaj is nagy bizonytalanságot okoz a becsült paraméterekben, sőt, még a szükséges paraméterek számát illetően is. A bakteriorhodopszin fotociklusának egy igen összetett modelljén alapuló szimulált adatok felhasználásával – modern statisztikai technikák (keresztvalidáció, Bayes-i optimalizálás) alkalmazása révén – új gépi tanulási módszert dolgoztunk ki e probléma kezelésére [Zimányi és mtsai, 2021]. Ez a módszer a kísérletileg mért fluoreszcencia-kinetika elemzése során is kiválóan teljesít.
Multifunkcionális femtobiológiai munkaállomás
A szegedi ELI ALPS Kutatóintézet egyedülálló infrastruktúrájára alapozva – a HUN-REN BRC és a Pécsi Tudományegyetem kutatócsoportjaival együttműködve – egy olyan állandó mérőállomást fejlesztünk, amelynek célja a fényenergiát hasznosító biológiai rendszerekben (fénygyűjtő komplexekben és fotoszintetikus reakcióközpontokban, retinális fehérjékben, növényi fotoreceptorokban) zajló ultragyors folyamatok tanulmányozása [Akhtar et al., 2025]. A mérési technikák egyrészt a femtoszekundumos, többdimenziós elektronikus spektroszkópia legkorszerűbb technológiájának továbbfejlesztésén [Singhal et al., 2025], másrészt pedig azon módszerek tökéletesítésén alapulnak, amelyeket korábban a fény által kiváltott, kis intenzitású koherens THz-sugárzás detektálására dolgoztunk ki.
AFM és Raman-mikroszkópiai laboratórium
Pásztázó szondás és konfokális Raman-mikroszkópia biológiai alkalmazásai
A laboratórium biológiai objektumok – az egyes fehérjektől kezdve az élő sejtek plazmamembránján át egészen a szövetekig – szerkezeti, morfológiai és mechanikai vizsgálatát végzi. A folyadékban történő, nanométeres léptékű mechanikai manipuláció és mérés jelentős előnyt biztosít a hagyományos sejt leképezési technikákkal szemben. A széles mérési tartomány lehetővé teszi a pikonewton nagyságrendű intermolekuláris erők, a nanonewton nagyságrendű intercelluláris erők, sőt, a sejtek és hordozófelületek közötti mikronewton nagyságrendű erők vizsgálatát is. A daganatok és a metasztázis képződés megértése és leírása kapcsán az utóbbi időben egyre nagyobb érdeklődés övezi a mechanikai vizsgálatokat [Varga et al., 2017]. Az a lehetőség, hogy közvetlenül tanulmányozhatjuk a daganatsejtek és környezetük közötti kölcsönhatást, kivételes kutatási távlatokat nyit meg. A laboratórium egyik aktuális kutatási témája a daganatsejtek, valamint az agyi endothelsejtek vagy periciták közötti mechanikai kölcsönhatások vizsgálata [Csonti et al., 2024; Fazakas et al., 2021]. A 7. ábra egy olyan rekonstruált, az erők nagysága szerint színezett adhéziós térképet mutat be, amelyet egy daganatsejt szondaként történő alkalmazásával rögzítettek.

7. ábra. Balra: a mérési elrendezés vázlatos ábrázolása. Jobbra: endothelsejtek adhéziós erővel színezett magasságrekonstrukciója, amely egy élő melanomasejt szondaként történő alkalmazásával készült.
Az atomerő mikroszkópia – kiegészítve a Raman-szóráson alapuló, jelölésmentes kémiai leképezéssel (8. ábra) – egy rendkívül hatékony fizikai-kémiai módszer, amely biológiai minták vizsgálatára is kiválóan alkalmas. Az eljárás roncsolásmentes és nem invazív eszközként szolgál arra, hogy külső jelölőanyagok alkalmazása nélkül, a sejten belül mutassuk ki a bevitt gyógyszereket. Az egyik legígéretesebb alkalmazási terület az egészséges és a daganatos sejtek megkülönböztetése – nem csupán in vitro, hanem in vivo környezetben is. A topográfiai, mechanikai (merevségi) és kémiai térképek együttes rögzítése kiváló lehetőséget nyújt a strukturális és dinamikus folyamatok tanulmányozására. A sikeres kutatási projektek közé tartozik többek között az oligonukleotidok önrendeződésének vizsgálata [Bálint és mtsai, 2007], nano- és mikrovezikulák szerkezeti és morfológiai elemzése [Laczkó-Dobos és mtsai, 2021], különböző baktériumtörzsek mechanikai jellemzése [Miclea és mtsai, 2010], a vörösvérsejtek plaszticitásának vizsgálata [Chakraborty és mtsai, 2019], élő agyi endothelsejtek leválási mintázatainak elemzése [Csonti és mtsai, 2024], valamint különféle szövetek kvantitatív feltérképezése. A fenti felsorolás korántsem teljes; csupán azt hivatott szemléltetni, milyen széles körben és milyen változatos tématerületeken nyújthat értékes információkat rendszerünk.

8. ábra. A konfokális Raman-spektroszkópiát és az atomerő-mikroszkópiát kombináló eszköz vázlata. Kombinált topográfia, Raman-szórási intenzitás és spektrális diszkriminatív térképezés vörösvértesteken.
Válogatott közleményeink
Abuammar, H., Bhattacharjee, A., Simon-Vecsei, Zs., Blastyak, A., Csordas, G., Pali, T. and Juhasz, G. (2021) Ion Channels and Pumps in Autophagy: A Reciprocal Relationship. Cells 2021, 10(12), 3537.
Akhtar, P., Wang, W., Singhal, S., Sarlós, F., Shen, J-R. and Lambrev, P. (2025) Excitation energy transfer and trapping in Photosystem I of the green alga Bryopsis corticulans. Photosynthesis Research 163, 62.
Bálint, Z., Nagy, K., Laczkó, I., Bottka, S., Végh, G.A., Szegletes, Z. and Váró, G. (2007) Adsorption and Self-Assembly of Oligodeoxynucleotides onto a Mica Surface.J. Phys. Chem. C 111(45), 17032–17037.
Bashtovyy, D., Marsh, D., Hemminga, M.A. and Páli, T. (2001) Constrained modeling of spin-labeled major coat protein mutants from M13 bacteriophage in a phospholipid bilayer. Protein Sci 10, 979-987.
Bashtovyy, D., Berczi, A., Asard, H. and Pali, T. (2003) Structure prediction for the di-heme cytochrome b(561) protein family. Protoplasma 221, 31-40.
Bérczi, A., Márton, Z., Laskay, K., Tóth, A., Rákhely, G., Duzs, Á., Sebők-Nagy, K., Páli, T. and Zimányi, L. (2023) Spectral and redox properties of a recombinant mouse cytochrome b561 protein suggest transmembrane electron transfer function. Molecules 28(5):2261.
Böde, K., Sebők-Nagy, K., Dlouhy, O., Steinbach, G., Benda, A., Garab, Gy. and Páli, T. (2026) Lipid assemblies mediating the fusion of photosystem-II enriched membranes characterized by DPH (1,6-diphenyl-1,3,5-hexatriene) fluorescence and fluorescence anisotropy lifetimes. Journal of Photochemistry and Photobiology B 275, 113361.
Chakraborty, P., Krisztina N., Dugmonits, K.N, Végh, A.G., Hollandi, R., Horváth, P., Maléth, J., Hegyi, P., Németh, G. and Hermesz, E. (2019) Failure in the compensatory mechanism in red blood cells due to sustained smoking during pregnancy.Chemico-Biological Interactions 313(1) 108821.
Csonka, C., Pali, T., Bencsik, P., Gorbe, A., Ferdinandy, P. and Csont, T. (2015) Measurement of NO in biological samples. Br J Pharmacol 172, 1620-1632.
Csonti, K., Fazakas, C., Molnár, K., Wilhelm, I., Krizbai, I.A., and Végh, A.G. (2024) Breast adenocarcinoma cells adhere stronger to brain pericytes than to endothelial cells. Coll. And Surf. B Biointerfaces 234, 113751.
DeNardis, N.I., Radić, T.M., Klacsová, M., Uhrikova, D., Frkanec, R., Zemła, J., Lekka, M., Lukeš, M., Prasil, O., Sebők-Nagy, K., Pali, T., Lisac, K., Chovancová, M., Ojdanic, K., Horvat, L., Štefanić, P.P., Smokrović, K., Maltar-Strmečki, N., Saftić, D.P., Piantanida, I. and Glavan, T.M. (2026) Biophysical approach to structural characterization of biocompatible microalgae-derived vesicles as sustainable drug carriers. Algal Research 104852.
Dér, A., Kelemen, L., Fabian, L., Taneva, S.G., Fodor, E., Pali, T., Cupane, A., Cacace, M.G. and Ramsden, J.J. (2007) Interfacial water structure controls protein conformation. J Phys Chem B 111, 5344-5350.
Emam, H.E., Koto, T., Sebok-Nagy, K., El-Shahat, M., Abdel-Gawad, H., Pali, T. and Abdelhameed, R.M. (2024) Synthesis, spectroscopic study and carbofuran adsorption of mixed metal (Co, Cu)@Ca-BTC frameworks aimed at wastewater cleaning. Journal of Industrial and Engineering Chemistry 139, 444-457.
Fazakas, C., Kozma, M., Molnár, K., Kincses, A., Dér, A., Fejér, A., Horváth, B., Wilhelm, I., Krizbai, I.A., and Végh, A.G. (2021) Breast adenocarcinoma-derived exosomes lower first-contact de-adhesion strength of adenocarcinoma cells to brain endothelial layer. Colloids Surf. B Biointerfaces 204, 111810.
Ferencz, C., Petrovszki, P., Kota, Z., Fodor-Ayaydin, E., Haracska, L., Bota, A., Varga, Z., Der, A., Marsh, D. and Pali, T. (2013) Estimating the rotation rate in the vacuolar proton-ATPase in native yeast vacuolar membranes. European Biophysics Journal 42, 147–158.
Ferencz, Cs-M., Petrovszki, P., Der, A., Sebok-Nagy, K., Kota, Z. and Pali, T. (2017) Oscillating electric field measures the rotation rate in a native rotary enzyme. Scientific Reports 7, 45309.
Holzenburg, A., Jones, P.C., Franklin, T., Páli, T., Heimburg, T., Marsh, D., Findlay, J.B.C, Finbow, M.E (1993) Evidence for a common structure for a class of membrane channels. Eur J Biochem 213(1) 21-30.
Khakurel, K.P., Fuertes, G., Sipos, A., Paragi, G., Dostal, J., Kloz, M., Žoldák, G., Andreasson, J. and Tóth, A. (2025) Ultrafast Dynamics in Flavocytochrome C by Using Transient Absorption and Femtosecond Fluorescence Lifetime Spectroscopy. The Journal of Physical Chemistry B 129(15), 3731-3739.
Khoroshyy, P., Tenger, K., Chertkova, R.V., Bocharova, O.V., Kirpichnikov, M.P., Borovok, N., Groma, G.I., Dolgikh, D.A., Kotlyar, A.B. and Zimányi, L. (2021) Kinetics and energetics of intramolecular electron transfer in single-point labeled TUPS-cytochrome c derivatives. Molecules 26(22):6976.
Klacsová, M., Sebők-Nagy, K., Páli, T., Chovancová, M., Almásy, L. and Uhríková, D. (2026) Microalgae-derived vesicles as potential carriers for therapeutic biomacromolecules. Journal of Drug Delivery Science and Technology 117, 107985.
Kostrzewa, A., Pali, T., Froncisz, W. and Marsh, D. (2000) Membrane location of spin-labeled cytochrome c determined by paramagnetic relaxation agents. Biochemistry 39(20), 6066-6074.
Kóta, Z., Horvath, L.I., Droppa, M., Horvath, G., Farkas, T. and Pali, T. (2002) Protein assembly and heat stability in developing thylakoid membranes during greening. Proceedings of the National Academy of Sciences USA 99, 12149-12154
Kóta, Z., Páli, T. and Marsh, D. (2004) Orientation and lipid-peptide interactions of gramicidin A in lipid membranes: polarized attenuated total reflection infrared spectroscopy and spin-label electron spin resonance. Biophys J 86, 1521-1531.
Kóta, Z., Pali, T., Dixon, N., Kee, T.P., Harrison, M.A., Findlay, J.B.C., Finbow, M.E. and Marsh, D. (2008) Incorporation of transmembrane peptides from the vacuolar H+-ATPase in phospholipid membranes: spin-label electron paramagnetic resonance and polarized infrared spectroscopy. Biochemistry 47(12), 3937–3949.
Koto, T., Ozvoldik, K. and Páli, T. (2026) Model of the T7 bacteriophage entry states. Version 26.3.20 , http://download.yasara.org/petworld/t7phageentry/index.html . Accession code: t7phageentry Accession code: t7phage @ Database: A database of biomolecular models with millions to billions of atoms for coarse-grained MD simulation and all-atom visualization ( http://download.yasara.org/petworld/index.html ).
Krekic, S., Zakar, T., Gombos, Z., Valkai, S., Mero, M., Zimányi, L., Heiner, Z. and Dér, A. (2020) Non-linear optical investigation of microbial chromoproteins. Front. Plant Sci 11:547818.
Krishnan, S.B., Winfred, J.S.R.V., Hilinski, E.F., Saltiel, J. and Zimányi, L. (2026) Transient absorption spectroscopy of the stilbenes in methanol – adiabatic cis -> trans photoisomerization by sequential two-photon excitation and revised ether quantum yields. J. Phys. Chem. A 130(37): 7404–7411.
Laczkó-Dobos H., Maddali, A.K, Jipa A., Bhattacharjee, A., Végh, A.G., Juhász, G. (2021) Lipid profiles of autophagic structures isolated from wild type and Atg2 mutant Drosophila. BBA - Molecular and Cell Biology of Lipids 1866(3), 158868.
Laczkó-Dobos, H., Bhattacharjee, A., Maddali, A.K., Kincses, A., Abuammar, H., Sebők-Nagy, K., Páli, T., Dér, A., Hegedűs, T., Csordás, G. and Juhász, G. (2024) PtdIns4p is required for the autophagosomal recruitment of STX17 (syntaxin 17) to promote lysosomal fusion. Autophagy 20 (7).
Lingvay, M., Akhtar, P., Sebok–Nagy, K., Pali, T. and Lambrev, P.H. (2020) Photobleaching of Chlorophyll in Light-Harvesting Complex II Increases in Lipid Environment. Frontiers in Plant Science 11, Article 849.
Marsh, D. and Páli, T. (2001) Infrared dichroism from the X-ray structure of bacteriorhodopsin. Biophys J 80, 305-312.
Marsh, D. and Pali, T. (2004) The protein-lipid interface: perspectives from magnetic resonance and crystal structures. Biochimica et Biophysica Acta 1666, 118-141.
Miclea, P.S, Péter, M., Végh, G., Cinege, G., Kiss, E., Váró, G., Horváth, I. and Dusha, I. (2010) Atypical Transcriptional Regulation and Role of a New Toxin-Antitoxin-Like Module and Its Effect on the Lipid Composition of Bradyrhizobium japonicum. Molecular Plant-Microbe Interactions 23(5), 638-650.
Misra, R., Das, I., Dér, A., Steinbach, G., Shim, J-G., Busse, W., Jung, K-H., Zimányi, L. and Sheves, M. (2023) Impact of protein-chromophore interaction on the retinal excited state and photocycle of Gloeobacter rhodopsin: role of conserved tryptophan residues. Chemical Science 14:9951.
Páli, T., Finbow, M.E., Holzenburg, A., Findlay, J.B.C., and Marsh, D. (1995) Lipid-Protein Interactions and Assembly of the 16-kDa Channel Polypeptide from Nephrops norvegicus. Studies with Spin-Label Electron Spin Resonance Spectroscopy and Electron Microscopy. Biochemistry 34(28), 9211-9218.
Páli, T., Finbow, E.M. and Marsh, D. (1999) Membrane assembly of the 16-kDa proteolipid channel from Nephrops norvegicus studied by relaxation enhancements in spin-label ESR. Biochemistry 38(43), 14311-14319.
Páli, T. and Marsh, D. (2001) Tilt, Twist, and Coiling in β-Barrel Membrane Proteins: Relation to Infrared Dichroism. Biophysical Journal 80, 2789-2797.
Páli, T., Bashtovyy, D. and Marsh, D. (2006) Stoichiometry of lipid interactions with transmembrane proteins - deduced from the 3-D structures. Protein Science 15(5), 1153-1161.
Páli, T. and Kóta, Z. (2026) Electron paramagnetic resonance spectroscopy of spin-labeled lipids for studying lipid-protein interaction in model- and biomembranes. Methods in molecular biology 3001, 555-588.
Páli, T., Feniouk, B. and Wilkens, S. (2024) Editorial: Functions, Working Mechanisms, and Regulation of Rotary ATPases and Ductin Proteins. Frontiers in Molecular Biosciences 11, 1399421.
Petrovszki, P., Sebők-Nagy, K. and Páli, T. (2021) The activity of native vacuolar proton-ATPase in an oscillating electric field – Demystifying an apparent effect of music on a biomolecule Frontiers in Molecular Biosciences 8, 772167.
Petrovszki, D., Valkai, S., Kelemen, L., Nagy, L., Agarwal, V., Krekic, Sz., Zimányi, L. and Dér, A. (2023) Microsecond all-optical modulation by biofunctionalized porous silicon microcavity. Nanomaterials 13:2070.
Rehman, A.u., Bashir, F., Ayaydin, F., Kota, Z., Pali, T., Vass, I. (2021) Proline is a quencher of singlet oxygen and superoxide both in vitro and in plant systems. Physiologia Plantarum 172, 7–18.
Sebők-Nagy, K., Kóta, Z., Kincses, A., Fazekas, Á.F., Dér, A., László, Z. and Páli, T. (2023a) Spin-Label Electron Paramagnetic Resonance Spectroscopy Reveals Effects of Wastewater Filter Membrane Coated with Titanium Dioxide Nanoparticles on Bovine Serum Albumin. Molecules 28(19), 6750.
Sebők-Nagy, K., Blastyák, A., Juhász, G. and Páli, T. (2023b) Reversible binding of divalent cations to Ductin protein assemblies-a putative new regulatory mechanism of membrane traffic processes. Frontiers in Molecular Biosciences 10, 1195010.
Singhal, S., Akhtar, P., Sarlós, F., Sipka, G., Sipos, Á., Jójárt, P., Gilicze, B., Seres, I., Bengery, Z., Tan, H. and Lambrev, P. (2025) Fast-scan pulse-shaper-assisted two-dimensional electronic spectroscopy of Photosystem I using high-repetition-rate supercontinuum pulses. Optics Express 33(26), 53851-53866.
Varga, B., Fazakas, C., Molnár, J., Wilhelm, I., Domokos, R.A., Krizbai, I.A., Szegletes, Z., Váró, G., and Végh, A.G. (2017) Direct mapping of melanoma cell - endothelial cell interactions. J. Mol. Recognit. 30(6):e2603.
Zimányi, L., Sipos, Á., Sarlós, F., Nagypál, R. and Groma, G. (2021) Machine learning-based model selection and parameter estimation from kinetic data of complex first-order reaction systems. PLOS One 16(8): e0255675.
Zimányi, L., Thekkan, S., Eckert, B., Condren, A.R., Dmitrenko,O., Kuhn, L.R., Alabugin, I.V. and Saltiel, J. (2020) Determination of the pKa values of trans-Resveratrol, a Triphenolic Stilbene, by Singular Value Decomposition. Comparison with Theory. J. Phys. Chem. A 124(31):6294-6302.
tudományos tanácsadó
emeritus kutatóprofesszor
tudományos munkatárs
tudományos munkatárs
tudományos munkatárs
tudományos munkatárs
tudományos munkatárs
tudományos munkatárs
ügyvivő szakértő
laboráns
PhD hallgató

PhD hallgató

MSc hallgató

BSc hallgató

BSc hallgató

BSc hallgató
|
PÁLI Tibor
|
tudományos tanácsadó | publikációk | CV |
|
ZIMÁNYI László
|
emeritus kutatóprofesszor | publikációk | CV |
|
SEBŐKNÉ NAGY Krisztina
|
tudományos munkatárs | publikációk | CV |
|
SIPOS Áron
|
tudományos munkatárs | publikációk | CV |
|
VÉGH Attila Gergely
|
tudományos munkatárs | publikációk | CV |
|
KOTO Teruaki
|
tudományos munkatárs | publikációk | CV |
|
KÓTA Zoltán
|
tudományos munkatárs | publikációk | CV |
|
TÓTH András
|
tudományos munkatárs | publikációk | CV |
|
SARLÓS Ferenc
|
ügyvivő szakértő | publikációk | CV |
|
BARTA Csilla
|
laboráns | publikációk | CV |
|
CSÁNYI Katalin
|
PhD hallgató | publikációk | CV |
|
MIR, Sakina
|
PhD hallgató | publikációk | CV |
|
BOLEGA Réka
|
MSc hallgató | publikációk | CV |
|
JANKÓ Richárd
|
BSc hallgató | publikációk | CV |
|
PASKA Péter
|
BSc hallgató | publikációk | CV |
|
SINYI Noémi
|
BSc hallgató | publikációk | CV |
 vissza